RAD51D (RAD51 paralog D)

symbol:
RAD51D
locus group:
protein-coding gene
location:
17q12
gene_family:
alias symbol:
R51H3|Trad|HsTRAD
alias name:
recombination repair protein|DNA...
entrez id:
5892
ensembl gene id:
ENSG00000185379
ucsc gene id:
uc002hir.4
refseq accession:
NM_002878
hgnc_id:
HGNC:9823
approved reserved:
1998-05-27
17q12

RAD51D是RAD51基因家族的重要成员之一,该家族主要负责DNA同源重组修复(HRR)过程,对维持基因组稳定性至关重要。RAD51D编码的蛋白质在DNA双链断裂修复中发挥核心作用,它与RAD51B、RAD51C等家族成员形成复合物,促进DNA链的配对和交换,确保损伤DNA的正确修复。RAD51基因家族的共性在于它们均参与同源重组修复通路,并在减数分裂和有丝分裂中维持染色体完整性。RAD51D的突变可能导致HRR功能缺陷,增加基因组不稳定性,进而与多种癌症(如乳腺癌、卵巢癌)的发生密切相关。研究表明,RAD51D突变携带者患遗传性乳腺癌和卵巢癌的风险显著升高。当RAD51D过表达时,可能增强DNA修复能力,但异常高表达也可能导致基因组过度重组,引发染色体异常。相反,RAD51D表达降低或功能缺失会削弱DNA修复效率,导致细胞对DNA损伤剂(如化疗药物)更敏感,但同时也增加癌症风险。RAD51D与其他HRR通路基因(如BRCA1/2)存在功能协同,其表达异常可能影响整个修复网络的平衡。此外,RAD51D在减数分裂中确保同源染色体的正确分离,其缺陷可能导致不育或发育异常。针对RAD51D功能的研究为癌症治疗提供了新靶点,例如通过抑制RAD51D来增强肿瘤细胞对放疗或PARP抑制剂的敏感性。

中文English

由该基因编码的蛋白质是RAD51蛋白家族的一个成员。 RAD51家族成员是高度相似的细菌的RecA和酿酒酵母的Rad51,已知是参与同源重组和DNA修复。这种蛋白与RAD51的家庭的几名其他成员,包括RAD51L1,RAD51L2和XRCC2复杂。与此蛋白质形成蛋白复合物已显示出催化单和双链DNA之间的同源配对,并且被认为是在DNA中的重组修复的早期阶段发挥作用。选择性剪接结果在多个抄本变形。通读转录还此基因和下游侧无名指和含有1(RFFL)基因FYVE样结构域之间存在。 [由RefSeq的,2011年1月提供]
RAD51D基因的碱基序列:[NCBI]
Loading Gene Browser...
蛋白质序列
1MGVLRVGLCP GLTEEMIQLL RSHRIKTVVD LVSADLEEVA
41QKCGLSYKAL VALRRVLLAQ FSAFPVNGAD LYEELKTSTA
81 ILSTGIGSL DKLLDAGLYT GEVTEIVGGP GSGKTQVCLC
121MAANVAHGLQ QNVLYVDSNG GLTASRLLQL LQAKTQDEEE
161Q AEALRRIQ VVHAFDIFQM LDVLQELRGT VAQQVTGSSG
201TVKVVVVDSV TAVVSPLLGG QQREGLALMM QLARELKTLA
241RD LGMAVVV TNHITRDRDS GRLKPALGRS WSFVPSTRIL
281LDTIEGAGAS GGRRMACLAK SSRQPTGFQE MVDIGTWGTS
321EQS ATLQGD QT
结构预测来自 AlphaFold DB(UniProt: O75771),颜色表示 pLDDT 置信度(深蓝高、黄橙低)。
RAD51D基因的碱基突变:           仅显示部分snp
rs1871892       rs11540072       rs28363253       rs28363254       rs28363255       rs28363256       rs74362545       rs76165674       rs112523851       rs114252524       rs114893073       rs149433213       rs149853642       rs150086168       rs150620282       rs182139866       rs187857016      

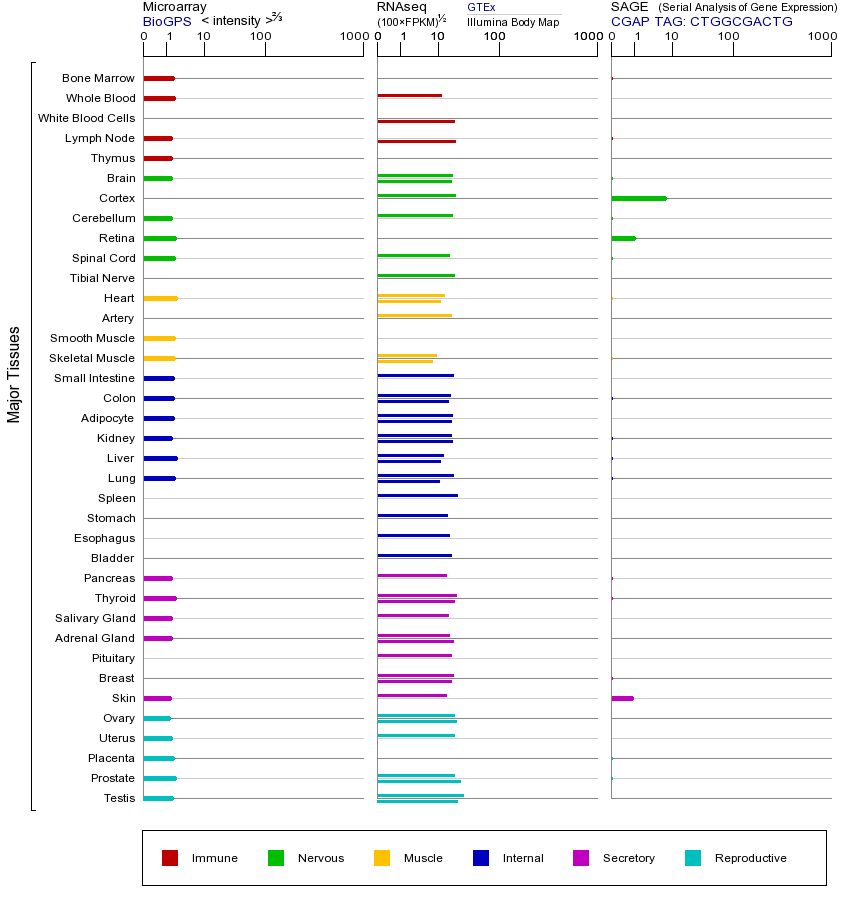
RAD51D基因在不同组织中的表达:    [UniProt]

基因在不同组织中的表达图
正向引物序列
正向Tm值
反向引物序列
反向Tm值
评分
TTGTCTTACAAGGCCCTGG
60
AGTTCCTCGTAGAGATCAGC
59
GATGAGGAGGAACAGGCAG
60
CTTCACAGTTCCTGAAGAACC
59
AATACTCCATGGTGATGGC
57
CAAGCAGTTTATCAAGACATCC
58
CTTACAAGACATGGAGGGC
58
TTCTTCAGAGCATTCCTGAC
58
CTTGGCCTTGATGATGCAG
59
TATGTGGTTGGTCACCACC
60
AGGATCAAGACAGTGGTGG
59
TCAAGACTTGTAAGACAAGCC
58
CTTACAAGACATGGAGGGC
58
CTTCAGAGCATTCCTGACC
58
GTCTTACAAGGCAGAAGCT
58
TTCCTGAAGAACCAGTCAC
57
GATGAGGAGGAACAGGCAG
60
AGAGATAGCACCTAGAAAGCTG
60
TTGTCTTACAAGGCCCTGG
60
AGTTCCTCGTAGAGATCAGC
59
      尚未收录相关数据

RAD51D基因(以及对应的蛋白质)的细胞分布位置:

[UniProt]     [GenomeNet]

" d="M482.414,245.296c3.539,4.293,4.455,10.009,0.202,11 c-4.244,0.996-4.983-10.983-8.293-8.438c-5.271,4.08,9.834,12.271,5.144,17.287c-3.717,3.607-6.172-5.75-10.839-1.976 c-4.673,3.776,6.781,7.299,2.831,11.326c-4.354,4.045-6.979-1.449-9.837-5.517c-1.193-1.742-2.059-3.851-3.595-2.748 c-1.516,1.078-1.854,1.795-0.938,3.666c2.374,4.854,9.235,10.119,5.156,12.535c-5.636,3.346-5.044-8.871-9.426-7.574 c-4.388,1.291,2.557,10.66-1.245,11.141c-4.089,0.545-3.483-10.239-6.979-8.575c-2.522,1.206-0.929,3.071-0.938,4.899 c0.004,1.32-0.964,3.6-2.372,4.062c-3.593,1.171-8.544-1.065-10.251-3.59c-6.04-8.93,0.396-15.997,4.639-7.015 c3.023,4.642,5.182,0.834,2.839-2.219c-1.032-1.354-4.309-5.901-0.781-7.252c2.904-1.113,4.271,1.941,5.985,4.592 c2.61,4.016,5.485,0.117,3.031-3.414c-1.828-2.633-2.74-3.803,3.156-7.42c6.405-4.369,6.52,3.869,10.077,0.646 c2.309-1.832-4.783-5.149,0.06-8.995c2.896-2.293,5.18,6.207,7.961,3.516c3.523-2.737-7.717-7.369,0.117-11.736 C473.413,240.77,480.519,242.891,482.414,245.296z"/> Extracellular space Cytosol Plasma membrane Cytoskeleton Lysosome Endosome Peroxisome ER Golgi Apparatus Nucleus Mitochondrion 0 1 2 3 4 5 Confidence
  • 质膜
  • 细胞质
  • 细胞外
  • 高尔基体
  • 囊泡
  • 细胞骨架
  • 内质网
  • 细胞核
  • 内体
  • 溶酶体
  • 线粒体

RAD51D基因的本体(GO)信息:

GO库代码
对应的蛋白质
来源代码
GO:0003677
H0UID0 (UniProtKB)
IEA
GO:0005524
H0UID0 (UniProtKB)
IEA
GO:0005654
H0UID0 (UniProtKB)
IDA
GO:0006281
H0UID0 (UniProtKB)
IEA
GO:0008094
H0UID0 (UniProtKB)
IEA
GO:0003677
K7EMF1 (UniProtKB)
IEA
GO:0005524
K7EMF1 (UniProtKB)
IEA
GO:0006281
K7EMF1 (UniProtKB)
IEA
GO:0008094
K7EMF1 (UniProtKB)
IEA
GO:0003677
K7EN92 (UniProtKB)
IEA
GO:0005524
K7EN92 (UniProtKB)
IEA
GO:0006281
K7EN92 (UniProtKB)
IEA
GO:0008094
K7EN92 (UniProtKB)
IEA
GO:0003677
K7ESL4 (UniProtKB)
IEA
GO:0005524
K7ESL4 (UniProtKB)
IEA
GO:0006281
K7ESL4 (UniProtKB)
IEA
GO:0008094
K7ESL4 (UniProtKB)
IEA
GO:0000150
O75771 (UniProtKB)
IBA
GO:0000707
O75771 (UniProtKB)
IBA
GO:0000723
O75771 (UniProtKB)
IMP
GO:0000724
O75771 (UniProtKB)
IMP
GO:0000731
O75771 (UniProtKB)
TAS
GO:0000732
O75771 (UniProtKB)
TAS
GO:0000781
O75771 (UniProtKB)
IDA
GO:0000784
O75771 (UniProtKB)
IDA
GO:0003677
O75771 (UniProtKB)
TAS
GO:0003690
O75771 (UniProtKB)
IBA
GO:0003697
O75771 (UniProtKB)
IDA
GO:0005515
O75771 (UniProtKB)
IPI
GO:0005515
O75771 (UniProtKB)
IPI
GO:0005515
O75771 (UniProtKB)
IPI
GO:0005515
O75771 (UniProtKB)
IPI
GO:0005515
O75771 (UniProtKB)
IPI
GO:0005515
O75771 (UniProtKB)
IPI
GO:0005515
O75771 (UniProtKB)
IPI
GO:0005515
O75771 (UniProtKB)
IPI
GO:0005515
O75771 (UniProtKB)
IPI
GO:0005515
O75771 (UniProtKB)
IPI
GO:0005515
O75771 (UniProtKB)
IPI
GO:0005515
O75771 (UniProtKB)
IPI
GO:0005515
O75771 (UniProtKB)
IPI
GO:0005515
O75771 (UniProtKB)
IPI
GO:0005515
O75771 (UniProtKB)
IPI
GO:0005515
O75771 (UniProtKB)
IPI
GO:0005515
O75771 (UniProtKB)
IPI
GO:0005515
O75771 (UniProtKB)
IPI
GO:0005515
O75771 (UniProtKB)
IPI
GO:0005515
O75771 (UniProtKB)
IPI
GO:0005515
O75771 (UniProtKB)
IPI
GO:0005515
O75771 (UniProtKB)
IPI
GO:0005515
O75771 (UniProtKB)
IPI
GO:0005515
O75771 (UniProtKB)
IPI
GO:0005515
O75771 (UniProtKB)
IPI
GO:0005524
O75771 (UniProtKB)
IEA
GO:0005634
O75771 (UniProtKB)
TAS
GO:0005654
O75771 (UniProtKB)
IDA
GO:0005654
O75771 (UniProtKB)
TAS
GO:0005654
O75771 (UniProtKB)
TAS
GO:0005654
O75771 (UniProtKB)
TAS
GO:0005654
O75771 (UniProtKB)
TAS
GO:0005654
O75771 (UniProtKB)
TAS
GO:0005654
O75771 (UniProtKB)
TAS
GO:0005654
O75771 (UniProtKB)
TAS
GO:0005654
O75771 (UniProtKB)
TAS
GO:0005654
O75771 (UniProtKB)
TAS
GO:0005654
O75771 (UniProtKB)
TAS
GO:0005654
O75771 (UniProtKB)
TAS
GO:0005654
O75771 (UniProtKB)
TAS
GO:0005657
O75771 (UniProtKB)
IDA
GO:0005737
O75771 (UniProtKB)
IEA
GO:0005813
O75771 (UniProtKB)
IDA
GO:0006281
O75771 (UniProtKB)
TAS
GO:0006289
O75771 (UniProtKB)
IEA
GO:0006312
O75771 (UniProtKB)
IBA
GO:0007131
O75771 (UniProtKB)
TAS
GO:0008094
O75771 (UniProtKB)
IDA
GO:0010212
O75771 (UniProtKB)
IBA
GO:0033063
O75771 (UniProtKB)
IDA
GO:0036297
O75771 (UniProtKB)
IEA
GO:0042148
O75771 (UniProtKB)
IDA
GO:0043015
O75771 (UniProtKB)
IDA
GO:0051726
O75771 (UniProtKB)
IEA
GO:0000400
O75771 (UniProtKB)
IDA
GO:0004520
O75771 (UniProtKB)
IBA

可能调控 RAD51D基因的相关microRNA:     

String
BioGrid
IntAct
mentha
MINT
加载中…
关联基因 作用方式 资源库来源/分值
疾病名称 关系值 NofPmids NofSnps 来源
BREAST-OVARIAN CANCER, FAMILIAL, SUSCEPTIBILITY TO, 4 0.12 0 0 CLINVAR
ovarian neoplasm 0.12 1 0 CTD_human
Hereditary Breast and Ovarian Cancer Syndrome 0.12 0 0 ORPHANET
Malignant neoplasm of breast 0.008729747 8 1 BeFree_GAD
Bloom Syndrome 0.00272435 1 0 LHGDN
Mammary Neoplasms 0.00272435 1 0 LHGDN
Ovarian Carcinoma 0.002714419 10 0 BeFree
Malignant neoplasm of ovary 0.002442977 9 0 BeFree
Multiple Sclerosis 0.002367032 1 0 GAD
Neoplasm Recurrence, Local 0.002367032 1 0 GAD
Structural insight into how RAD51 paralog exchange regulates RAD51 filament formation.
Rawal Y, Kwon Y, Jia L, Ruben EA, Ji JH, Guo L, Stratton CM, Nayak D, Tovar M, Fang Q, Jamalruddin MA, Zhou S, Kuppa S, Syed S, Jasper AM, Katz JN, Rogers CM, Kaur H, Samentar L, Zhao W, Dray E, Zhang F, Stoilova-McPhie S, Taylor AB, Burma S, Rao MK, Libich DS, Hromas R, Mazin AV, Jasin M, Zhou D, Bernstein KA, Greene EC, Wasmuth EV, Sung P, Olsen SK Nat Struct Mol Biol IF: 0.000 2026-05-00
BCDX2-CX3 and DX2-CX3 complexes assemble and stabilize RAD51 filaments.
Koo CW, Xiao J, Coassolo S, Liu J, Yu C, Azumaya CM, Gore SK, Cheung TK, Brillantes B, Rose CM, Heyer WD, Ciferri C, Yatskevich S Nature IF: 56.1 2026-05-00
The Impact of Conventional Chemotherapy Regimens and Targeted Drugs on Ovarian Function in Breast Cancer Patients.
Haskoylu S, Sahin SB, Altıntas A, Yildiz S, Bildik G, Benlioglu C, Turan V, Kim S, Oktem O Reprod Sci IF: 2.8 2026-04-00
Saturation Genome Editing reveals the functional impact of RAD51D and XRCC2 variants.
Casadei S, Snyder MW, Woo I, Smith N, Best S, Garge RK, Rodriguez-Salas L, Wenman C, Seid O, Hosokai A, Xu A, Tejura M, Gupta P, Heidl S, Muffley L, Ranchalis J, Stewart R, Goff NJ, Hemker SL, Baierl J, Dicks EM, Pharoah P, Bjornkjaer L, Roenlund K, Kitzman JO, Bernstein KA, Stergachis AB, Radivojac P, Fowler DM, Starita LM bioRxiv 2026-06-13
Frequency of germline pathogenic variants in breast cancer predisposing genes in a national cohort of young women with breast cancer.
Metcalfe K, Narod SA, Poll A, Hoey C, Warner E, Baxter NN, Isherwood S, MacDougall E, Zemani N, Yang F, Suwito JS, Quan ML, Akbari MR, RUBY Study Group Br J Cancer IF: 7.8 2026-06-23
Impact of germline RAD51D mutations on breast cancer: Susceptibility to DNA-damaging agents.
Jo S, Shim WC, Park S, Kweon T, Ryu WJ, Hwang Y, Kim MW, Ahn JH, Lee YJ, Lee SH, Won D, Nam EJ, Han JW, Kim TI, Park JS, Park HS Mol Ther Oncol 2026-06-18
Monoallelic germline RAD51C, RAD51D, and BRIP1 variants in hereditary cancer testing: Variant spectrum and clinical counselling implications.
Özdemir-Pehlivan Z, Büke A, Çevik-Demir E, Saat H, Bahsi T, Yıldırım ÖA, Erdem HB Mutat Res 2026-06-19

评论加载中...

登录后即可发表评论 登录 注册

联系地址

山东省济南市章丘区文博路2号

齐鲁师范学院 genelibs生信实验室

山东省济南市高新区舜华路750号

大学科技园北区F座4单元2楼

电话: 0531-88819269
微信公众号

关注微信订阅号,实时查看信息,关注医学生物学动态。


商务邮箱

E-mail: product@genelibs.com